Artículo de investigación
Estimaciones de la diversidad de hongos y sus potenciales familias de plantas micorrizógenas en el Parque Nacional Natural Serranía de Chiribiquete en la Amazonia Colombiana
Estimates of fungal diversity and potential mycorrhizal plant families in Serranía de Chiribiquete National Natural Park, Colombian Amazon
Recibido: · Aceptado: · Publicado:
Cómo citar: Marroquín-Franco, R., & Rivera-Mera, L. A. (2026). Estimaciones de la diversidad de hongos y sus potenciales familias de plantas micorrizógenas en el Parque Nacional Natural Serranía de Chiribiquete en la Amazonia Colombiana. Revista Científica Del Amazonas, 9(18), 5–20. https://doi.org/10.34069/RA/2026.18.01
Resumen
El Parque Nacional Natural Serranía de Chiribiquete (PNNSCh), ubicado en la Amazonia colombiana, constituye una de las áreas protegidas continuas de bosque húmedo tropical más extensas del planeta; sin embargo, su diversidad fúngica permanece escasamente documentada. Debido a la ausencia de inventarios micológicos exhaustivos, este estudio tuvo como objetivo estimar la riqueza potencial de hongos del PNNSCh y sintetizar la información disponible sobre las familias de plantas con potencial para establecer asociaciones micorrícicas, con el fin de generar una línea base para futuras investigaciones y estrategias de conservación. Para ello, se realizó una revisión crítica de literatura científica y bases de datos especializadas, complementada con la aplicación de tres enfoques macroecológicos ampliamente utilizados para estimar la riqueza fúngica: la relación planta–hongo, la extrapolación especie–área y un modelo de proporcionalidad biogeográfica. A partir de un inventario de 2.479 especies de plantas, se estimó que el parque podría albergar entre 14.874 y 24.790 especies de hongos, mientras que los registros actualmente disponibles representan únicamente una fracción mínima de esta riqueza potencial. Asimismo, se identificaron 118 familias de plantas con potencial micorrizógeno, predominando aquellas asociadas a micorrizas arbusculares. Los resultados evidencian una marcada brecha de conocimiento sobre la funga del PNNSCh y resaltan la necesidad de impulsar inventarios sistemáticos e investigaciones integrativas que permitan comprender la diversidad, ecología y funciones de los hongos en uno de los ecosistemas más biodiversos del planeta.
Palabras clave: Biodiversidad; Escudo guayanés; Funga; Micología; Micorrizas; Relación planta–hongo.
Abstract
The Serranía de Chiribiquete National Natural Park (PNNSCh), located in the Colombian Amazon, is one of the largest continuous protected areas of tropical rainforest worldwide; however, its fungal diversity remains poorly documented. Given the absence of comprehensive mycological inventories, this study aimed to estimate the potential fungal richness of the PNNSCh and synthesize the available information on plant families capable of forming mycorrhizal associations, thereby providing a baseline for future research and conservation planning. A critical review of scientific literature and specialized biodiversity databases was conducted and complemented with three widely used macroecological approaches to estimate fungal richness: the plant–fungus ratio, species–area extrapolation, and a biogeographical proportionality model. Based on an inventory of 2.479 plant species, the park was estimated to harbor between 14.874 and 24.790 fungal species, whereas the currently documented records represent only a very small fraction of this potential richness. In addition, 118 plant families with mycorrhizal potential were identified, with arbuscular mycorrhizal associations predominating. These findings reveal a substantial knowledge gap regarding the funga of the PNNSCh and highlight the urgent need for systematic inventories and integrative research to improve our understanding of fungal diversity, ecology, and ecosystem functions in one of the world's most biodiverse tropical forests.
Keywords: Biodiversity; Guiana Shield; Funga; Mycology; Mycorrhizae; Plant–fungus relationship.
Introducción
Los hongos desempeñan funciones ecológicas esenciales como descomponedores, simbiontes mutualistas y reguladores de procesos biogeoquímicos, y son fundamentales para el funcionamiento y la resiliencia de los ecosistemas forestales tropicales (Mueller et al., 2007; Smith & Read, 2008; Tedersoo et al., 2014). En particular, las asociaciones micorrizógenas influyen de manera decisiva en la nutrición vegetal, la estructura de las comunidades y los ciclos de nutrientes (Wang & Qiu, 2006).
Las estimaciones de la diversidad fúngica mundial varían ampliamente debido a las diferencias metodológicas y al elevado número de especies aún no descritas. Inicialmente se propuso que la riqueza global oscilaba entre 2,2 y 3,8 millones de especies (Hawksworth & Lücking, 2017); sin embargo, estudios más recientes basados en enfoques moleculares y macroecológicos han sugerido cifras superiores, que van desde 6,28 hasta 19 millones de especies (Antonelli et al., 2023; Baldrian et al., 2022). En una síntesis reciente, Hyde et al. (2024) plantean que la diversidad fúngica probablemente se encuentra entre 2,2 y 13,2 millones de especies, reflejando la persistente incertidumbre sobre la verdadera magnitud de este reino. En consecuencia, se estima que entre el 92 % y el 95 % de las especies de hongos del planeta aún permanecen sin describir formalmente (Antonelli et al., 2023; Hyde et al., 2024). A pesar de los importantes avances impulsados por estudios taxonómicos, ecológicos y herramientas de secuenciación de alto rendimiento, el conocimiento de la diversidad fúngica continúa siendo marcadamente desigual entre diversas regiones del planeta (Antonelli et al., 2023; Baldrian et al., 2022).
Esta brecha de conocimiento es particularmente evidente en países tropicales, donde se concentra una proporción significativa de la biodiversidad mundial, pero donde la funga continúa siendo uno de los componentes biológicos menos documentados (Mueller et al., 2007; Tedersoo et al., 2014). No obstante, en regiones megadiversas donde los inventarios biológicos aún son incompletos, las estimaciones indirectas de riqueza constituyen una herramienta ampliamente aceptada para aproximarse al número potencial de especies y establecer prioridades de investigación y conservación (Gaya et al., 2022; Hawksworth & Lücking, 2017).
En particular, los modelos basados en la relación planta–hongo, la relación especie–área y las aproximaciones biogeográficas han sido utilizados para inferir patrones de diversidad fúngica cuando los muestreos exhaustivos resultan inviables debido a la gran extensión del territorio, la heterogeneidad ambiental y la elevada proporción de especies aún no descritas (Baldrian et al., 2022; Hawksworth & Lücking, 2017; Mueller et al., 2007;). Aunque estos enfoques no sustituyen los inventarios de campo ni las aproximaciones moleculares, proporcionan una línea base robusta para dimensionar las brechas de conocimiento, orientar futuras expediciones y apoyar la toma de decisiones en investigación y conservación de la biodiversidad (Antonelli et al., 2023; Hyde et al., 2024). En este contexto, Colombia representa un escenario de especial interés debido a su extraordinaria riqueza biológica y a la escasez de estudios micológicos desarrollados en gran parte de su territorio (Gaya et al., 2022).
Colombia es reconocido como uno de los países más biodiversos del planeta, al concentrar cerca del 10 % de las especies conocidas a nivel global en aproximadamente el 0,7 % de la superficie terrestre (Moreno et al., 2018; Myers et al., 2000). Esta riqueza biológica se explica por su ubicación geográfica estratégica y por la convergencia de varias regiones biogeográficas, entre ellas la Amazonia, los Andes y la Orinoquia (Rangel-Ch, 2015) en este contexto, Colombia ocupa los primeros lugares en diversidad de aves y orquídeas, y se sitúa entre los países con mayor riqueza de anfibios, reptiles, peces de agua dulce e insectos (SIB Colombia, 2025).
En la Amazonia colombiana, y particularmente al nordeste, la información disponible sobre la composición, distribución y diversidad de los hongos continúa siendo limitada y se concentra en un reducido número de localidades y grupos taxonómicos (Mueller et al., 2007; Tedersoo et al., 2014). En consecuencia, extensas áreas protegidas como el Parque Nacional Natural Serranía de Chiribiquete (PNNSCh) permanecen prácticamente inexploradas desde el punto de vista micológico (Cárdenas et al., 2017; Marroquín Franco, 2024), lo que restringe la comprensión de la diversidad fúngica, sus asociaciones ecológicas y su papel en el funcionamiento y la resiliencia de los ecosistemas amazónicos.
ElPNNSCh constituye un elemento central de la Amazonia colombiana y del Escudo Guayanés occidental, el parque protege vastas áreas de selva húmeda tropical, con microhábitats singulares y elevados niveles de endemismo (Berry et al., 1995; Cárdenas et al., 2017). Si bien la flora vascular del PNNSCh ha sido objeto de inventarios relativamente detallados, otros componentes de la biodiversidad, como los hongos, permanecen poco explorados (Cárdenas et al., 2017; Marroquín Franco, 2024).
En este contexto, las estimaciones regionales de la diversidad fúngica constituyen una herramienta fundamental para generar líneas base de conocimiento micologíco,en una de las áreas megadiversas y escasamente exploradas como el PNNSCh. En consecuencia, el presente estudio tiene como objetivo sintetizar la evidencia bibliográfica disponible sobre las familias de plantas con potencial para establecer asociaciones micorrícicas en el PNNSCh y generar estimaciones conservadoras de su riqueza fúngica potencial, con el propósito de aportar una base científica que oriente futuras investigaciones, fortalezca la comprensión de la biodiversidad del parque y contribuya al diseño de estrategias de conservación de la funga amazónica.
Metodología
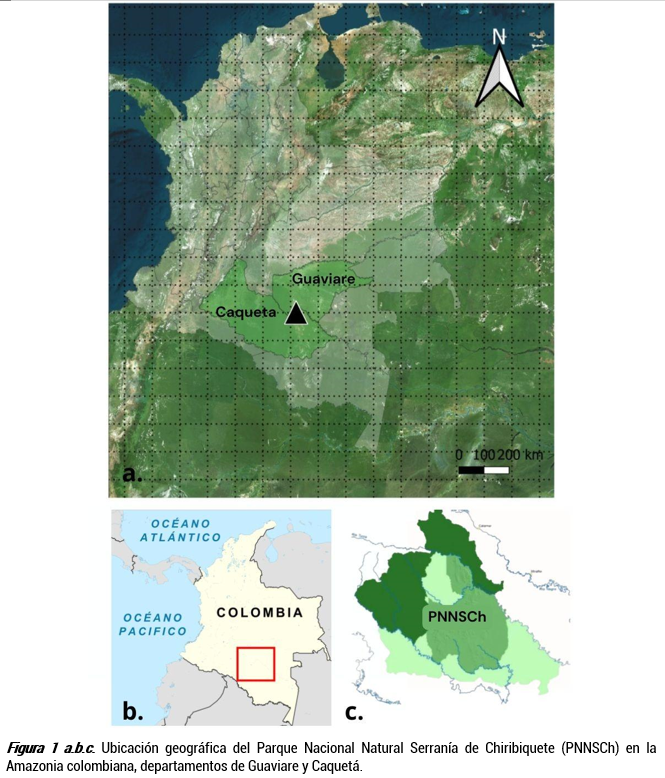
Area de estudio (Figura 1) El PNNSCh, se encuentra ubicado en la Amazonía colombiana en la provincia de la Guayana Occidental, distrito del Alto Río Negro, específicamente sobre la plataforma paleozoico-precámbrica de la formación Araracuara (Berry et al., 1995), en los departamentos de Guaviare y Caquetá, esta región se caracteriza por una notable diversidad fitogeográfica, producto de la interacción de los biomas confluentes de la Amazonia, los Andes, la Guayana y la Orinoquía, lo que la distingue de otras expresiones del Escudo Guayanés como la Guayana venezolana y la Amazonia brasileña (Cárdenas et al., 2017). En la actualidad dicha región abarca más de 4.3 millones de hectáreas de selva húmeda tropical, donde emergen formaciones rocosas denominadas tepuyes, que presentan microhábitats únicos que incluyen un sinnúmero de especies endémicas y es reconocido por su excepcional biodiversidad, riqueza cultural, humana y arqueológica (Ministerio de Ambiente y Desarrollo Sostenible, 2018).
Revisión bibliográfica y compilación de información
Se realizó una revisión bibliográfica sistemática, orientada a recopilar información sobre la diversidad fúngica registrada en el PNNSCh, la flora presente en el área y las asociaciones micorrícicas conocidas para las familias de plantas reportadas.
La búsqueda se efectuó entre marzo del 2024 hasta diciembre del 2025, se consultaron artículos indexados, libros especializados, monografías, catálogos taxonómicos y bases de datos de biodiversidad, GBIF, el Sistema de Información sobre Biodiversidad de Colombia (SiB Colombia) y la base de datos de Parques Nacionales Naturales de Colombia (Rojas, 2020).
Se emplearon combinaciones de palabras clave en español e inglés, entre ellas: "Parque Nacional Natural Serranía de Chiribiquete", "Amazon fungi", "Colombia fungi", "mycorrhiza", "ectomycorrhiza", "arbuscular mycorrhiza", "fungal diversity", "vascular plants of Amazon", “vascular plants of Parque Nacional Natural Serranía de Chiribiquete", “Amazon rainforest", "Escudo Guayanés" y "PNNSCh".
Se incluyeron únicamente publicaciones revisadas por pares, libros científicos y bases de datos institucionales con respaldo taxonómico, privilegiando registros sustentados mediante ejemplares depositados en herbarios o fungarios, así como nomenclatura actualizada en Index Fungorum 2025. Se excluyeron documentos sin información taxonómica verificable, literatura gris sin revisión científica y registros duplicados provenientes de múltiples bases de datos. Los registros obtenidos fueron revisados manualmente para homogeneizar la nomenclatura taxonómica.
Identificación de familias con potencial micorrizógeno
A partir del listado florístico del PNNSCh publicado por Cárdenas et al. (2017) y el GBIF (Rojas, 2020), se identificaron las familias de plantas con potencial para formar asociaciones micorrícicas. La clasificación del tipo de micorriza para cada familia se realizó mediante la integración de la información disponible en las síntesis de Brundrett (2009), Wang y Qiu (2006), Smith y Read (2008) y Corrales et al. (2018), considerando los principales tipos de simbiosis reportados a nivel mundial: micorrizas arbusculares (MA), micorrizas ericoides (ErM), micorrizas orquidoides (MO), ectomicorrizas (EcM) y ectendomicorriza (EEM). Cuando una familia presentaba más de un tipo de asociación documentada, se registraron todas las asociaciones reportadas en la literatura especializada.
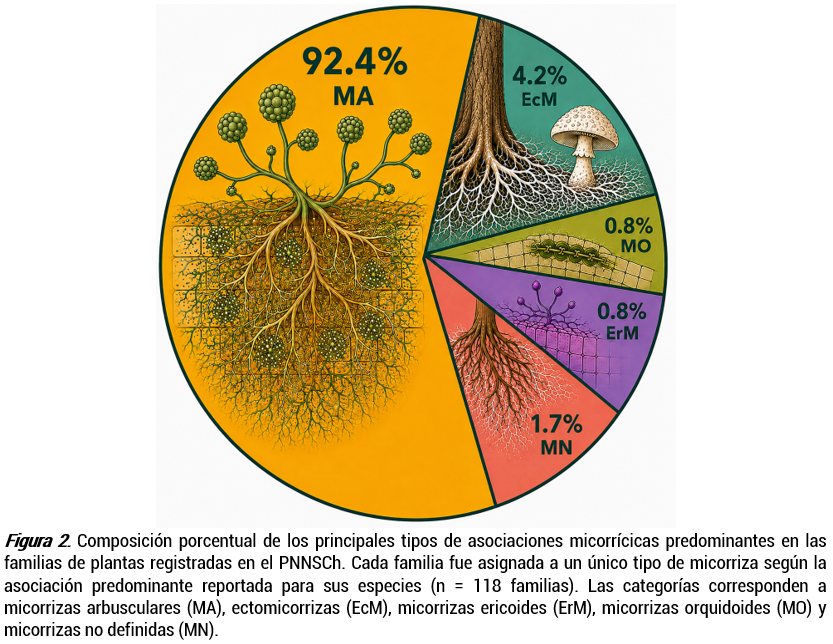
Con el fin de representar la composición de los principales tipos de asociaciones micorrícicas mediante categorías mutuamente excluyentes, cada familia de plantas fue clasificada de acuerdo con el tipo de micorriza predominante reportado en la literatura especializada (Brundrett, 2009; Brundrett & Tedersoo, 2018; Wang & Qiu, 2006). En los casos en que una familia presentó más de un tipo de asociación micorrizógena (p. ej., MA+EcM o MA+ErM), la asignación se realizó considerando el tipo predominante, definido como aquel que representa la mayor proporción de especies dentro de la familia. Esta reclasificación permitió contabilizar cada familia una única vez y calcular las frecuencias relativas utilizadas para la elaboración del diagrama de composición micorrizógena del PNNSCh.
Estimación de la riqueza fúngica potencial
Debido a la ausencia de inventarios micológicos exhaustivos para el PNNSCh, la riqueza potencial de hongos fue estimada mediante tres enfoques macroecológicos complementarios ampliamente utilizados para aproximar la diversidad fúngica en regiones insuficientemente exploradas (Hawksworth & Lücking, 2017).
Modelo 1. Relación planta–hongo
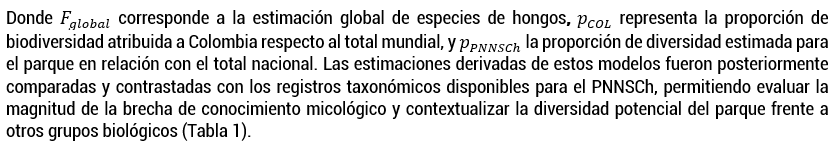
Se estimó la riqueza fúngica potencial utilizando la relación
entre especies de plantas y hongos propuesta por Hawksworth y Lücking (2017),
considerando una relación conservadora de seis a diez especies de hongos por
cada especie de planta, mediante la ecuación:
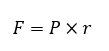
Modelo 2. Relación especie–área
En segundo lugar, se utilizó un modelo de extrapolación basado en
la relación especie–área, ampliamente aplicado en biogeografía, expresado como:

Modelo 3. Proporcionalidad biogeográfica
Finalmente, se aplicó un enfoque de proporcionalidad biogeográfica
que estima la riqueza potencial de hongos a partir de la proporción que
representa la biodiversidad colombiana respecto a la diversidad global,
expresado como:
Brecha de
conocimiento micológico Los registros verificados disponibles evidencian que los estudios
micológicos en el PNNSCh han sido limitados, hasta la fecha; un listado de
plantas y líquenes reporta 4 especies de hongos liquenizados, Cladia
aggregata (Sw.) Nyl, Cladonia crassiuscula Ahti, Cladonia
secundana Nyl y Dictyonema sericeum sinónimo de Dictyonema
thelephora (Spreng.) Zahlbr., Cat. Lich, 6 géneros, Cladina, Coenogonium,
Cora, Parmotrema, Usnea y Ocellularia,
pertenecientes a 5 familias Cladoniaceae, Coenogoniaceae, Coraceae,
Parmeliaceae y Thelotremataceae (Cárdenas et al., 2017; IndexFungorum, 2025);
por otro lado, en la base de datos GBIF del PNNSCh se registran solo 3 taxones
a nivel de familia de hongos MA, Acaulosporaceae, Gigasporaceae y Glomeraceae
(Rojas, 2020). Dichos muestreos, aunque valiosos, resultan insuficientes en
comparación con los estudios florísticos realizados en el área, siendo
considerado el PNNSCh el Parque Nacional Natural de Colombia con el mayor
número de especies de plantas conocidas (Cárdenas et al., 2017). El análisis bibliográfico revela una discrepancia abismal entre la
diversidad de plantas en el PNNSCh y el conocimiento taxonómico actual de su
funga. Los inventarios florísticos de referencia reportan 2.479 especies de
plantas (Cárdenas et al., 2017; Rojas, 2020), está marcada asimetría entre el
conocimiento botánico y micológico refleja un patrón ampliamente reconocido en
ecosistemas tropicales, donde los inventarios florísticos han avanzado
considerablemente más rápido que los estudios sobre hongos (Antonelli et al.,
2023; Mueller et al., 2007; Tedersoo et
al., 2014). En consecuencia, la escasez de registros disponibles responde a un
déficit histórico de exploración más que a una baja diversidad fúngica en los
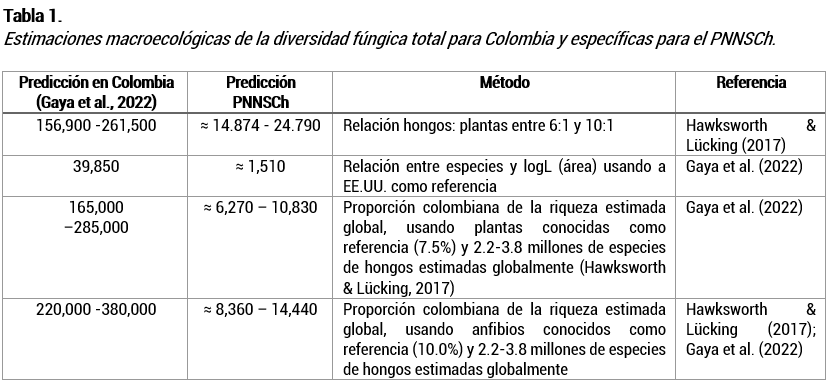
ecosistemas. Estimaciones de la riqueza fúngica potencial La aplicación de los tres enfoques macroecológicos produjo
estimaciones contrastantes de la riqueza fúngica potencial del PNNSCh (Tabla
1), evidenciando la incertidumbre inherente a este tipo de aproximaciones, pero
coincidiendo en que la diversidad esperada supera ampliamente el conocimiento
taxonómico disponible. El modelo basado en la relación planta–hongo (6:1–10:1) estimó
entre 14.874 y 24.790 especies de hongos, constituyéndose en la proyección más
elevada del presente estudio. Esta estimación se fundamenta en la existencia de
2.479 especies de plantas registradas para el PNNSCh (Rojas, 2020) y en la
estrecha dependencia ecológica que mantienen numerosos grupos de hongos con las
plantas hospederas (Hawksworth
& Lücking, 2017). Es crucial
enfatizar que las estimaciones basadas en una relación planta-hongo de 1:6-1:10
son conservadoras. La evidencia en bosques tropicales hiperdiversos sugieren
que estas proporciones pueden ser mucho mayores, alcanzando hasta 1:200, lo que
implica que una sola especie de planta puede tener 200 especies de hongos
asociados (Aptroot, 2001), incluso una sola hoja de una planta puede albergar
entre 50 a 80 especies de hongos (Lücking & Matzer, 2001), además, se han
reportado árboles tropicales que albergan más de 5.000 especies de hongos
endófitos (Chaverri, 2017). El modelo 2, basado en la relación especie–área y parametrizado a
partir de datos empíricos de Estados Unidos (Gaya et al., 2022), generó una
estimación conservadora de aproximadamente 1,510 especies de hongos para el
PNNSCh (Tabla 1). Esta cifra, aunque notablemente inferior a la derivada del
enfoque planta–hongo, resulta consistente con aproximaciones macroecológicas a
gran escala y refleja el carácter restrictivo de este tipo de modelos cuando se
aplican a regiones tropicales hiperdiversas, donde la heterogeneidad ambiental
y la complejidad ecológica tienden a subestimar la riqueza real, el modelo
especie–área produjo una estimación considerablemente menor (≈1.510 especies),
mientras que el modelo de proporcionalidad biogeográfica arrojó valores
intermedios, entre aproximadamente 6.270 y 14.440 especies, dependiendo del
grupo biológico utilizado como referencia, este
modelo se basa en patrones espaciales generales de acumulación de
especies y constituye una aproximación ampliamente utilizada en biogeografía;
sin embargo, cuando se aplica a bosques tropicales altamente heterogéneos puede
producir estimaciones conservadoras, ya que los modelos clásicos no incorporan
plenamente procesos como la agregación espacial de las especies, la limitación
en la dispersión y la heterogeneidad ambiental, factores que incrementan la
riqueza observada a múltiples escalas (Plotkin et al., 2000; Shen et al.,
2009). El modelo 3, fundamentado en un enfoque de proporcionalidad
biogeográfica, estima la riqueza fúngica del PNNSCh a partir de la fracción que
representa la biodiversidad colombiana respecto al total global. Utilizando
como análogos grupos taxonómicos bien documentados, como plantas (≈7,5 %) y
anfibios (≈10 %), se proyecta un rango de entre aproximadamente 6,270 y 14,440
especies de hongos para el área de estudio (Tabla 1). Este enfoque integra
escalas globales y regionales, proporcionando una estimación intermedia que, si
bien depende de supuestos comparativos, resulta útil para contextualizar la
diversidad fúngica dentro de patrones biogeográficos ampliamente reconocidos. En contraste, el
modelo planta–hongo incorpora de manera explícita las interacciones ecológicas
entre ambos grupos, lo que resulta particularmente pertinente en bosques
húmedos tropicales donde gran parte de la diversidad fúngica depende directa o
indirectamente de la vegetación (Blackwell, 2011; Hawksworth & Lücking,
2017; Hyde et al.,
2024). Finalmente, el modelo biogeográfico representa una aproximación
intermedia al extrapolar patrones nacionales y globales hacia el área de
estudio (Hawksworth & Lücking, 2017; Gaya et al., 2022; Hyde et al., 2024). En conjunto, las estimaciones derivadas de los distintos modelos
predictivos evidencian la extraordinaria magnitud de la diversidad fúngica
potencial en el PNNSCh, sugiriendo un elevado potencial de diversidad
micológica. No obstante, esta riqueza contrasta de manera drástica con el
conocimiento taxonómico actual, limitado a tan solo cuatro especies
registradas, lo que representa aproximadamente entre el 0,016% y el 0,027 % de
la diversidad estimada dependiendo del modelo considerado. Esta brecha pone de
manifiesto un sesgo significativo de submuestreo y resalta la urgente necesidad
de intensificar los esfuerzos de exploración micológica, inventarios
sistemáticos y estudios integrativos que permitan revelar la verdadera
dimensión de la funga en este ecosistema estratégico. La base de esta
riqueza fúngica potencial reside en la extraordinaria diversidad de plantas
hospederas presentes en el PNNSCh, muchas de las cuales establecen asociaciones
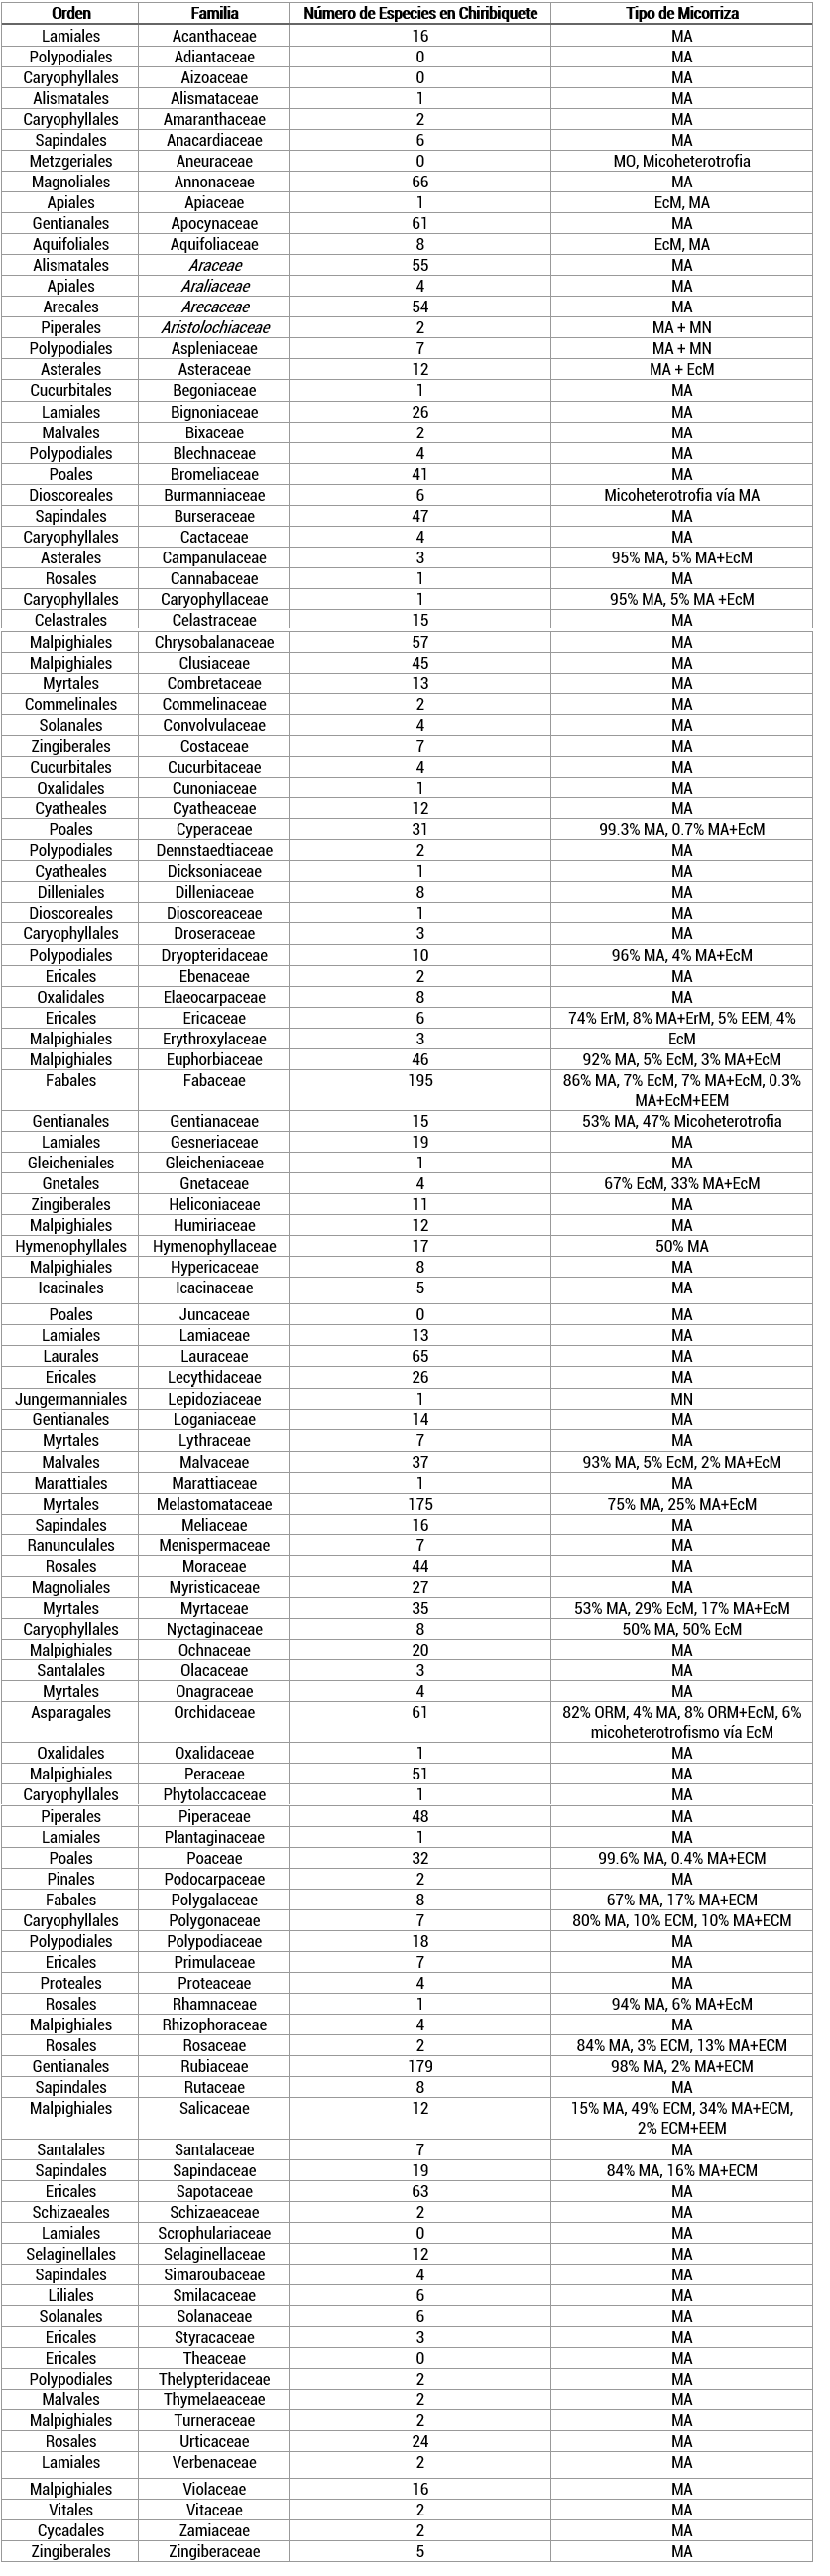
micorrícicas obligadas o facultativas. Nuestra compilación registra 118
familias, distribuidas en 46 órdenes y un total de 2.128 especies de plantas
con potencial de establecer asociaciones micorrizógenas (Tabla 2). Esta
diversidad constituye una base potencialmente amplia para el establecimiento de
comunidades fúngicas asociadas a las raíces y para la conformación de redes
subterráneas de interacción planta–hongo. Las asociaciones representan una de
las interacciones simbióticas más extendidas entre plantas terrestres y hongos,
y desempeñan funciones fundamentales en la adquisición de nutrientes, el
crecimiento vegetal y el funcionamiento de los ecosistemas (Brundrett &
Tedersoo, 2018; Smith & Read, 2008; Van Der Heijden et al., 2015). La composición de
hospederos está dominada numéricamente por familias predominantemente asociadas
con micorrizas arbusculares (MA), entre las que destacan Fabaceae (195
especies), Rubiaceae (179), Melastomataceae (175), Annonaceae (66), Lauraceae
(65), Sapotaceae (63), Apocynaceae (61) y Orchidaceae (61) (Tabla 2). Este
predominio de asociaciones MA es consistente con el patrón general observado a
escala global, donde aproximadamente el 72 % de las especies de plantas
presentan asociaciones MA, mientras que cerca del 2% desarrollan asociaciones EcM,
1,5 % asociaciones ErM y alrededor del 10 % asociaciones MO (Brundrett
& Tedersoo, 2018). Las asociaciones MA son particularmente importantes en
los ecosistemas tropicales, donde la mayoría de las especies vegetales
establece este tipo de simbiosis y donde los hongos MA contribuyen a la
adquisición de fósforo y otros nutrientes relativamente inmóviles en el suelo (Cardoso
& Kuyper, 2006; Smith & Read, 2008; Wang & Qiu, 2006). Uno de los
resultados más relevantes de la compilación es la presencia de familias cuyos
representantes pueden establecer más de un tipo de asociación micorrizógena, lo
que refleja una importante diversidad funcional de las estrategias de
interacción planta–hongo. Entre estas se encuentran Apiaceae, Aquifoliaceae,
Asteraceae, Campanulaceae, Euphorbiaceae, Fabaceae, Gnetaceae, Malvaceae,
Myrtaceae, Nyctaginaceae, Polygonaceae, Rosaceae y Salicaceae (Tabla 2). En
estas familias se registran combinaciones de asociaciones MA y EcM y, en
determinados linajes, otras formas especializadas de micorriza, incluidas
asociaciones ectendomicorrícicas (EEM) (Brundrett, 2009; Brundrett &
Tedersoo, 2018; Wang & Qiu, 2006). La coexistencia de diferentes
estrategias micorrizógenas dentro de una misma familia no implica que todas las
especies presenten simultáneamente los mismos tipos de asociación, sino que
evidencia la diversidad de trayectorias evolutivas y estrategias funcionales
que han surgido en las interacciones entre plantas y hongos (Brundrett &
Tedersoo, 2018; Soudzilovskaia
et al., 2020). La presencia de
hospederos con capacidad de establecer asociaciones EcM resulta particularmente
relevante para comprender el potencial micológico del PNNSCh. Entre las
familias con una señal EcM más evidente destacan Gnetaceae, Salicaceae,
Myrtaceae, Nyctaginaceae, Erythroxylaceae, Polygonaceae y Fabaceae, aunque con
diferentes proporciones de especies y combinaciones de estrategias
micorrizógenas (Tabla 2). Gnetaceae, por ejemplo, presenta en la compilación
una proporción de 67 % de asociaciones EcM y 33 % de MA+EcM, mientras que
Salicaceae presenta 49 % de EcM, 34 % MA+EcM y 2 % de EcM+EEM. Estos patrones
son particularmente relevantes considerando que las asociaciones EcM, aunque
menos frecuentes que las MA a escala global, están ampliamente distribuidas en
los ecosistemas tropicales y muestran una elevada diversidad de plantas
hospederas y hongos asociados (Corrales et al., 2018; Tedersoo et al., 2020). En el contexto
neotropical, las familias Nyctaginaceae, Polygonaceae y Fabaceae constituyen
algunos de los grupos con mayor representación entre las plantas EcM
confirmadas, mientras que Gnetaceae también presenta especies con asociaciones
EcM (Corrales et al., 2018). En particular, Corrales et al. (2018) señalan que
las asociaciones EcM tropicales presentan una fuerte variación regional en la
identidad y abundancia de sus hospederos, y que las comunidades EcM pueden
adquirir especial relevancia en ambientes con baja disponibilidad de
nutrientes. Asimismo, la evidencia disponible indica que la diversidad de
plantas y hongos EcM tropicales probablemente se encuentra subestimada debido a
la limitada información disponible para numerosos linajes y regiones (Corrales
et al., 2018). En este sentido, la composición de hospederos identificada en el
PNNSCh constituye un escenario particularmente relevante para futuras
investigaciones sobre la diversidad EcM amazónica. En la Amazonia,
diversos estudios han documentado comunidades EcM asociadas con árboles de
Fabaceae, especialmente de linajes de Caesalpinioideae, así como con
representantes de Nyctaginaceae y Polygonaceae. Estas asociaciones adquieren
especial importancia en bosques de arena blanca y otros ambientes
oligotróficos, donde las condiciones edáficas pueden favorecer estrategias
simbióticas que incrementan la eficiencia en la adquisición de nutrientes (Corrales
et al., 2018; Henkel et al., 2012; Vasco-Palacios et al., 2018). La presencia
de estos grupos de plantas en el PNNSCh, por tanto, plantea la posibilidad de
que existan comunidades de hongos EcM poco explorados en sus diferentes
formaciones vegetales. Esta hipótesis resulta consistente con la evidencia de
que las asociaciones EcM tropicales pueden presentar una marcada diferenciación
asociada con gradientes de fertilidad del suelo y que los hongos EcM pueden ser
particularmente abundantes y diversos en ambientes con baja disponibilidad de
nutrientes (Corrales et al., 2018). La coexistencia
de múltiples estrategias micorrizógenas también puede favorecer el
establecimiento de complejas redes subterráneas de interacción entre plantas y
hongos, con implicaciones para la adquisición de nutrientes, el crecimiento y
establecimiento de las plantas, la tolerancia frente al estrés ambiental y la
dinámica de las comunidades vegetales (Cardoso & Kuyper, 2006; Smith &
Read, 2008; Van Der Heijden & Horton, 2009). Las redes micorrícicas pueden
conectar individuos de una misma especie o de diferentes especies vegetales
mediante estructuras hifales, facilitando potencialmente el movimiento de
nutrientes y otros recursos dentro de la comunidad (Simard, 2018; Van Der
Heijden & Horton, 2009). Asimismo, las asociaciones micorrizógenas pueden
modificar las interacciones entre plantas, influir en el establecimiento de
plántulas y contribuir a procesos relacionados con la resistencia al estrés y
la dinámica de las comunidades vegetales (Van
Der Heijden & Horton 2009; Van Der Heijden et al., 2015). En los
ecosistemas tropicales, donde la baja disponibilidad de fósforo, la acidez y
otras restricciones edáficas pueden limitar la productividad vegetal, estas
asociaciones adquieren especial relevancia funcional (Cardoso & Kuyper,
2006). A pesar de este
elevado potencial, la compilación evidencia importantes vacíos de información
taxonómica y ecológica. Algunas familias incluidas en la base no presentan
especies determinadas a nivel específico, entre ellas Adiantaceae, Aizoaceae,
Aneuraceae, Juncaceae, Scrophulariaceae y Theaceae (Tabla 2). Estos registros
deben interpretarse como familias para las cuales no se dispone de especies
determinadas hasta nivel específico dentro de la información analizada, y no
necesariamente como evidencia de su ausencia en el PNNSCh. Esta distinción es
fundamental, ya que la ausencia de registros taxonómicamente resueltos puede
reflejar limitaciones en el muestreo, identificación y documentación de la
flora, particularmente en regiones megadiversas y de difícil acceso como el
PNNSCh. En consecuencia,
la falta de resolución taxonómica representa un vacío de información importante
para estimar la diversidad potencial de las asociaciones micorrizógenas y,
particularmente, de los hongos asociados a las plantas del PNNSCh. La
identificación incompleta de los hospederos limita la posibilidad de establecer
relaciones precisas entre especies vegetales y tipos de micorriza y, por tanto,
de inferir la composición potencial de las comunidades fúngicas. Esta
limitación adquiere mayor importancia considerando que la diversidad de
asociaciones EcM en los trópicos continúa siendo subestimada y que persisten
importantes vacíos geográficos y taxonómicos en el conocimiento de sus plantas
hospederas y hongos asociados (Corrales et al., 2018). Por tanto, resulta
prioritario fortalecer los inventarios florísticos y micológicos, incrementar
la resolución taxonómica mediante aproximaciones morfológicas y moleculares y
desarrollar estudios específicos de las interacciones planta–hongo. Estos
esfuerzos permitirían avanzar desde una estimación basada en el potencial micorrizógeno
de la flora hacia una caracterización directa de la diversidad, estructura y
función de las comunidades micorrizógenas presentes en el PNNSCh. Tabla 2. Posibles familias de plantas micorrizógenas en el PNNSCh, y el tipo principal de asociación micorrícica, MA: Micorriza Arbuscular; EEM: Ectendomicorrizas; EcM: Ectomicorriza; ErM: Micorriza Ericoide; MO: Micorriza Orquidoide; MN: Micorriza no definida. Finalmente, la singularidad fisiográfica del
PNNSCh, con sus sistemas de tepuyes que albergan microhábitats aislados y altos
niveles de endemismo vegetal (Berry et al., 1995), sugiere la existencia de una
funga igualmente única y no descrita. Este panorama convierte al PNNSCh en un
sitio de alta prioridad para la exploración micológica sistemática, ya que cada
expedición tiene alta probabilidad de descubrir especies nuevas para la ciencia
y de elucidar complejas redes de interacciones fúngicas en ecosistemas amazónicos, como por ejemplo las múltiples
relaciones ecológicas de los hongos con los insectos y los anuros, siendo
indispensables para el equilibrio ecosistémico (Ballesteros-Aguirre et al.,
2025; Marroquín Franco et al., 2025). El presente estudio constituye la primera aproximación integral
para estimar la riqueza fúngica potencial del PNNSCh a partir de la diversidad
de plantas y de la síntesis del conocimiento disponible sobre asociaciones micorrizógenas.
Los resultados evidencian que la diversidad de hongos del parque ha sido
ampliamente subestimada, lo que pone de manifiesto un vacío de conocimiento
sobre uno de los componentes más diversos y funcionalmente relevantes de los
ecosistemas amazónicos. La recopilación de 118 familias de plantas con potencial para
establecer asociaciones micorrizógenas, incluye numerosas familias capaces de
desarrollar más de un tipo de simbiosis y sugiere la existencia de extensas
redes de interacción planta–hongo que probablemente desempeñan un papel
fundamental en el mantenimiento de los ciclos biogeoquímicos, la productividad
y la resiliencia de los ecosistemas en el PNNSCh. Estos resultados son
consistentes con los patrones descritos para otras regiones y refuerzan la
importancia de incorporar la funga como un componente esencial en los estudios
de biodiversidad y funcionamiento ecosistémico. Si bien las estimaciones obtenidas mediante los enfoques de
relación planta–hongo, especie–área y proporcionalidad biogeográfica presentan
distintos niveles de incertidumbre, la coincidencia entre los tres modelos al
evidenciar una riqueza potencial considerablemente superior a los registros
actualmente disponibles respalda la utilidad de las aproximaciones indirectas
como herramientas para establecer líneas base de conocimiento en regiones donde
los inventarios micológicos aún son insuficientes. En este sentido, las
estimaciones aquí presentadas deben interpretarse como escenarios conservadores
que podrán refinarse conforme se desarrollen inventarios de campo, estudios
taxonómicos y análisis moleculares. Finalmente, este trabajo proporciona una base científica para
orientar futuras estrategias de exploración biológica, monitoreo e
investigación micológica en el PNNSCh. Se recomienda priorizar inventarios
sistemáticos que integren recolectas estacionales, caracterización morfológica
y herramientas de secuenciación molecular, así como ampliar el estudio de los
diferentes grupos funcionales de hongos, incluyendo micorrizógenos, saprobios,
endófitos, patógenos y liquenizados. La incorporación de la diversidad fúngica
en los programas de monitoreo y en las estrategias de conservación del PNNSCh
permitirá avanzar hacia una visión más integral de la biodiversidad amazónica y
fortalecerá la gestión de una de las áreas protegidas más importantes del
Neotrópico. A la bióloga y micóloga Dra. Virginia Ramírez Cruz por revisarnos
el manuscrito y brindarnos valiosas sugerencias, a los integrantes del
Semillero de Investigación y Creación La Funga Colectiva por su constante apoyo
y motivación, en especial a la bióloga y micóloga Manuela Zuluaga-Moreno por la
ayuda en la sistematización y tratamiento de los datos.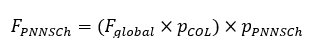
Resultados y discusión
Conclusiones
Agradecimientos
Referentes Bibliográficos